
Cell Metabolism:3-羟基硬脂酸是冷刺激下棕色脂肪给肝脏的“保护剂”
棕色脂肪通过重塑循环代谢组抵御肝脏氧化应激
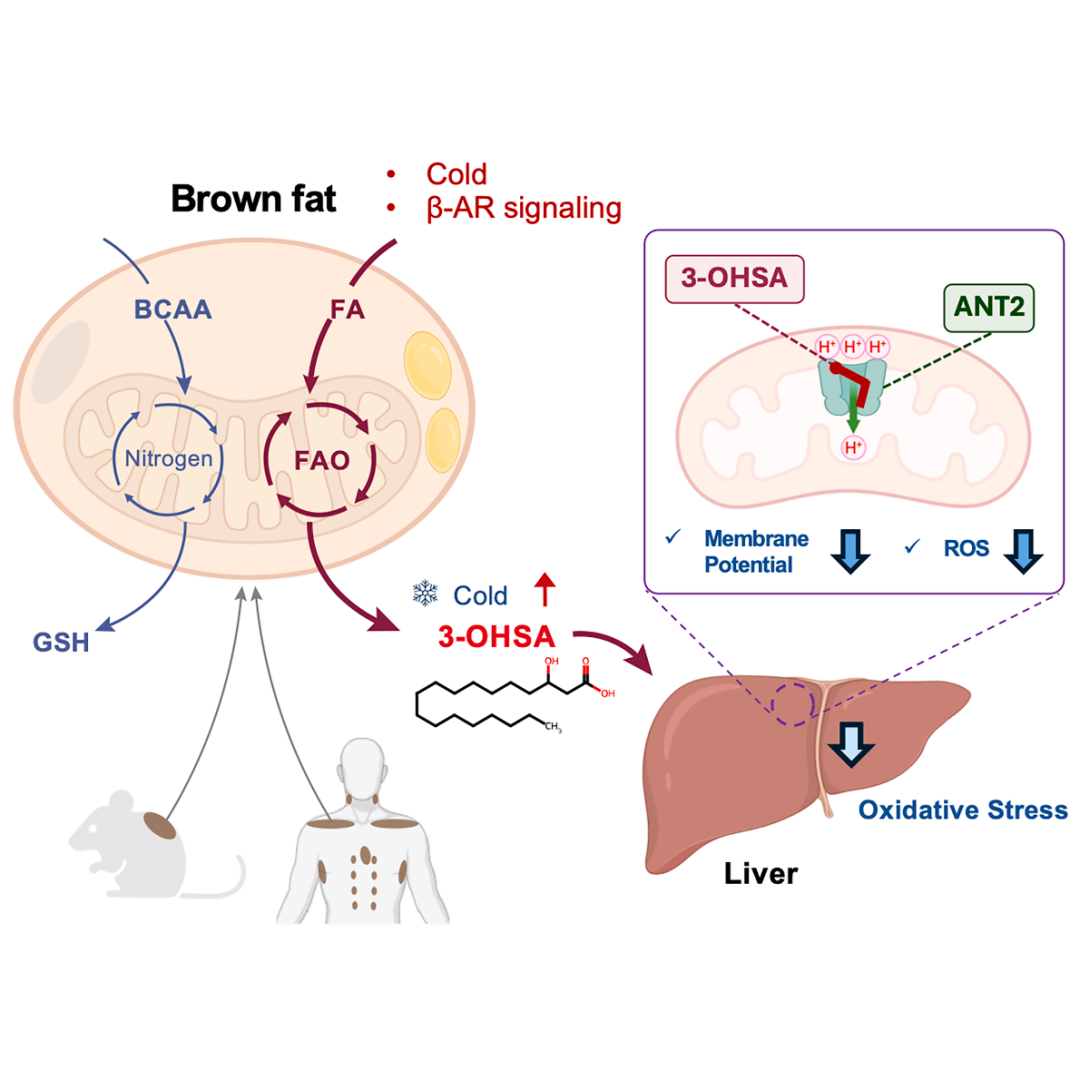
2026年7月,美国哈佛医学院等单位的研究人员在《Cell Metabolism》(IF:37.0)上发表了题为“Brown fat protects against hepatic oxidative stress by remodeling the circulating metabolome”的研究论文,绘制了棕色脂肪(BAT)相关循环代谢物图谱,并鉴定出一种冷诱导代谢物3-羟基硬脂酸(3-OHSA),该物质是BAT分泌的信号分子,能够保护肝脏免受氧化应激损伤。
亮点概述:
- 系统绘制BAT相关循环代谢组与脂质组图谱。
- BAT在清除循环支链氨基酸(BCAAs)和甘油三酯中发挥关键作用。
- 冷诱导产生的3-OHSA由BAT生成并向肝脏传递信号。
- 3-OHSA通过降低线粒体膜电位来减轻肝脏氧化应激。
研究背景:
BAT是高代谢器官,在抵御心血管代谢疾病方面具有重要作用。传统观点认为,BAT特异性蛋白解偶联蛋白1(UCP1)通过产热增加机体能耗、减重,以此改善糖代谢,但多项研究推翻了这一单一机制:敲除BAT核心调控复合物(如:PRDM16-EHMT1)会诱发肝胰岛素抵抗,且不伴随体重变化;UCP1缺陷小鼠仅在热中性环境才出现代谢紊乱;BAT相关BCAA代谢受损会引发肝氧化应激,产热功能却不受影响等。大规模人群数据也佐证,校正体重指数(BMI)后,BAT活性高的人群患2型糖尿病、血脂异常及心血管病的风险更低,说明BAT的代谢保护作用独立于产热与能量消耗,关键待明确介导全身代谢调控的信号介质。
现有研究发现BAT可释放肽、miRNA、脂质等因子,经内分泌、旁分泌、自分泌途径跨器官通讯。冷刺激诱导BAT分泌的成纤维细胞生长因子(FGF21)、脂肪酸(12,13-diHOME)、跨膜蛋白(EPDR1)均是代表性因子,但三者均无法特异性反映BAT活性。目前评估BAT活性的金标准18F-FDG PET/CT成本高、有辐射,难以普及,因此亟需开发稳定、无创的循环生物标志物。
研究结果:
为明确BAT对体内循环代谢和脂质分子的调控作用,研究构建Ucp1-Cre介导的特异性敲除产热脂肪细胞过氧化物酶体增殖物激活受体γ(Pparg)的小鼠品系(BAT-),同窝完整BAT小鼠(BAT+)作为对照。模型验证显示BAT-组小鼠的BAT大幅萎缩、产热相关基因显著下调,但常温下体重无差异。实验设置常温、不同时长6℃冷刺激、28℃热中性梯度处理,采用LC-MS对小鼠血清开展代谢组与脂质组检测。共检出206种代谢物、249种脂质随BAT缺失发生改变,并按变化趋势分簇。冷刺激下BAT-小鼠BCAAs、甘油酯、5-羟色胺、AMP蓄积,谷胱甘肽(GSH)稳态失衡;脂酰肉碱、羟基脂肪酸(OHFA)等脂质含量降低。常规游离脂肪酸两组无差异,仅DHA轻微下降,12,13-diHOME无显著变化。该结果与空腹短时冷刺激文献结论存在差异。研究人员通过BAT缺陷小鼠血清多组学,系统鉴定出一批全新的、和体内BAT活性密切相关的循环代谢及脂质标志物。
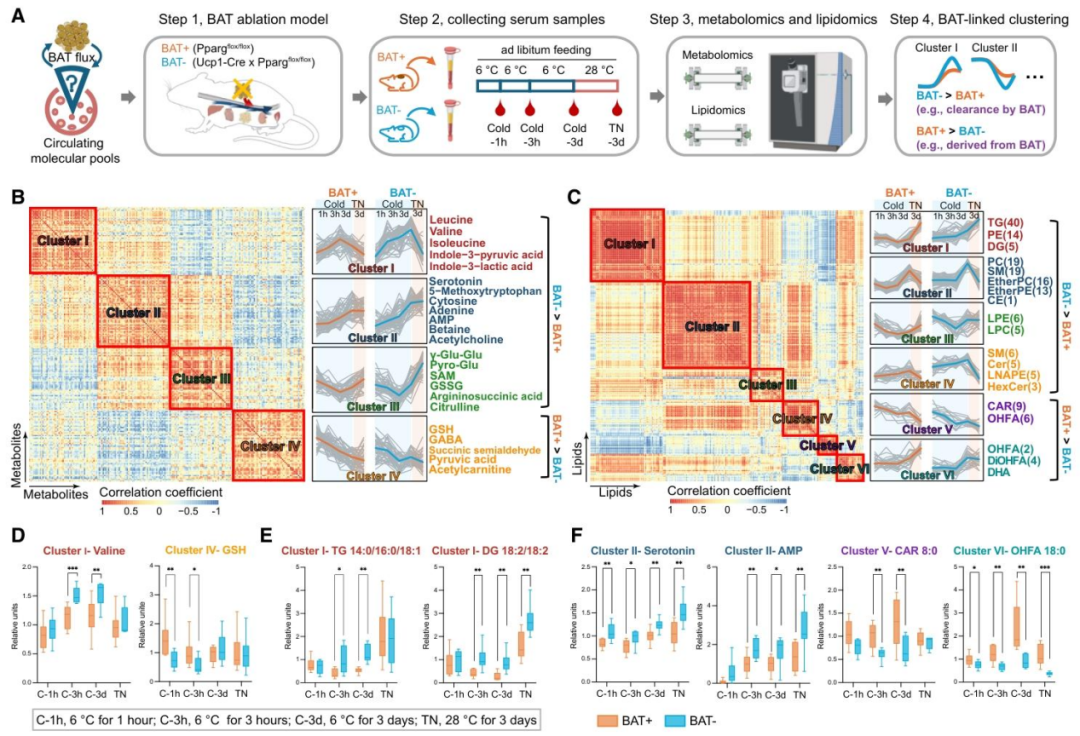
BAT在体内对循环代谢组和脂质组的影响
为明确各器官对BAT关联循环分子的贡献,研究人员检测了小鼠12种组织的代谢物、脂质分布,并通过离体肩胛间棕色脂肪(iBAT)外植体培养上清、iBAT和附睾白色脂肪(eWAT)的细胞外液、体外成熟BAT细胞培养液三类样本溯源分子来源。研究发现,BCAAs、GSH等多数代谢物并非BAT专属,BAT仅负责摄取分解BCAAs,GSH主要由肝脏合成。而OHFA等脂质高度富集于BAT,且不同组织OHFA碳链特征存在明显区分:心脏主要存有中链OHFA,C18长链OHFA为BAT特有。离体实验证实,BAT外植体可大量分泌各类OHFA,同时摄取甘油三酯;对比iBAT与eWAT细胞外液和人成熟脂肪细胞培养上清,BAT特异性释放C18长度的OHFA与不饱和磷脂。综合组织分布、离体分泌多组证据,在BAT-小鼠血液中明显减少的OHFA是BAT特异性合成、释放入血的特征脂质。

BAT相关循环脂质的组织来源
为探究BAT源性循环脂质是否同样与人体内BAT活性存在关联,研究纳入84名健康青年受试者,分别在27℃常温、19℃轻度冷暴露1小时后采集血清,并在采血1小时后检测锁骨上BAT标准化摄取值,将受试者均分为高BAT组与低BAT组。检测发现仅高BAT人群受冷后OHFA 18:0显著上升。跨物种比对证实OHFA 18:0是唯一人和小鼠共有的BAT关联脂质,其冷诱导升高水平与BAT活性显著正相关,可作为反映冷激活BAT的循环标志物。经各位置羟基硬脂酸标准品比对,研究人员发现检出的全部OHFA均匹配为3-OHSA,即3-OHFA 18:0。其生成于BAT线粒体脂肪酸β氧化通路,冷刺激会使该通路通量激增,中间产物蓄积并释放3-OHSA。BAT全套氧化酶表达且组织内3-OHSA含量均远高于其他组织。去甲肾上腺素信号可促进BAT分泌3-OHSA。小鼠与人的定量实验均证明:常温状态3-OHSA无法区分BAT活性,仅冷刺激后的上升幅度可作为标志物;BAT缺失或活性低下时,冷诱导3-OHSA升高效应会消失。血清3-OHSA冻融易降解,仅冷刺激影响3-OHSA含量能反映机体BAT功能水平。
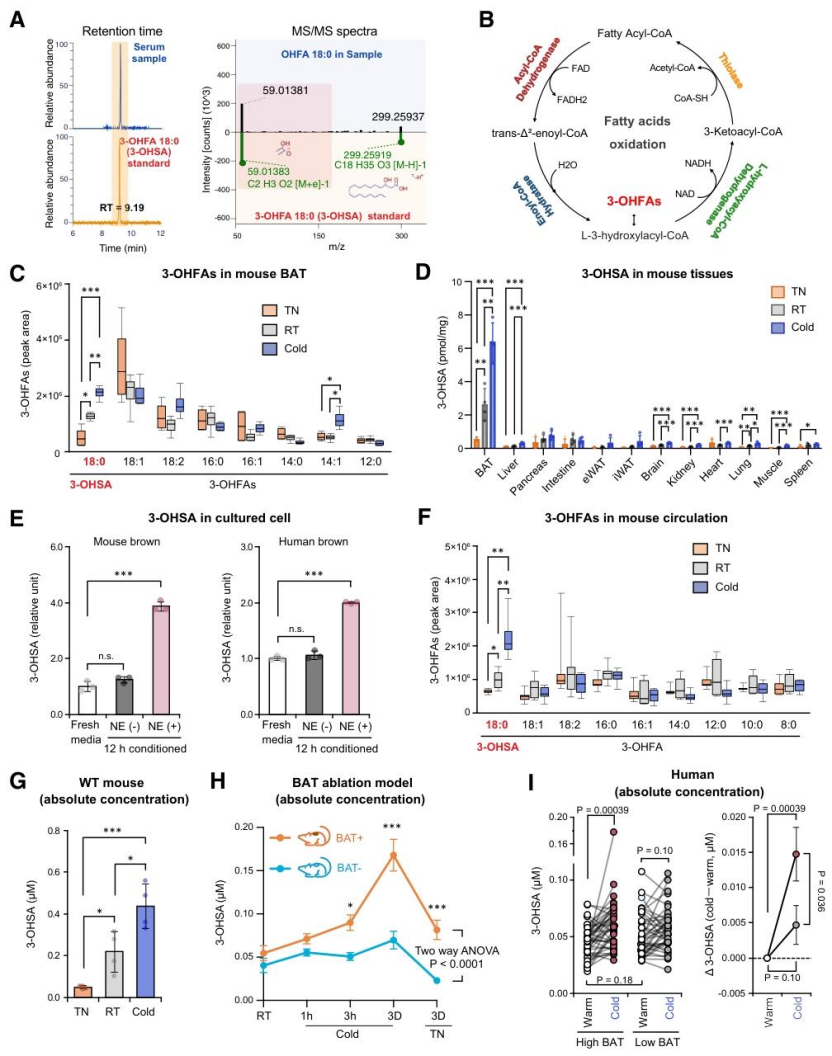
3-OHSA是一种冷诱导的、由BAT产生并释放入循环系统的脂质
为探究3-OHSA除标志物外的生物学功能,研究人员利用BAT敲除小鼠证实缺失BAT会加剧肝脏氧化应激。体外实验显示生理浓度3-OHSA可强效抑制肝肾线粒体产生活性氧,效果接近解偶联剂FCCP,该作用有组织选择性。3-OHSA抗氧化特性具有分子特异性:相较无羟基普通脂肪酸、不同碳链长度3-OHFA、其他位点羟基硬脂酸,3-OHSA抑制过氧化氢能力最强,该效应依赖羟基基团、羟基位置与脂肪酸碳链长度,生理下其核心作用是减少线粒体活性氧生成。研究人员为进一步探究3-OHSA抑制肝脏活性氧生成的深层机制,首先对线粒体膜电位进行检测。生理浓度3-OHSA可显著降低肝线粒体膜电位,作用强度与FCCP相当。随后进行高脂肥胖小鼠体内干预实验,证实3-OHSA不改变体重,但能大幅降低肝脏氧化损伤,保护效果近似冷激活BAT。腺苷酸转位酶(ANT)可调控膜电位、减少活性氧,肝脏主要表达ANT2。研究人员借助抑制剂与肝细胞siRNA敲除验证机制通路,发现3-OHSA特异性下调肝脏线粒体膜电位、缓解氧化应激,该作用至少部分依赖ANT2通道,同时存在其他辅助通路。
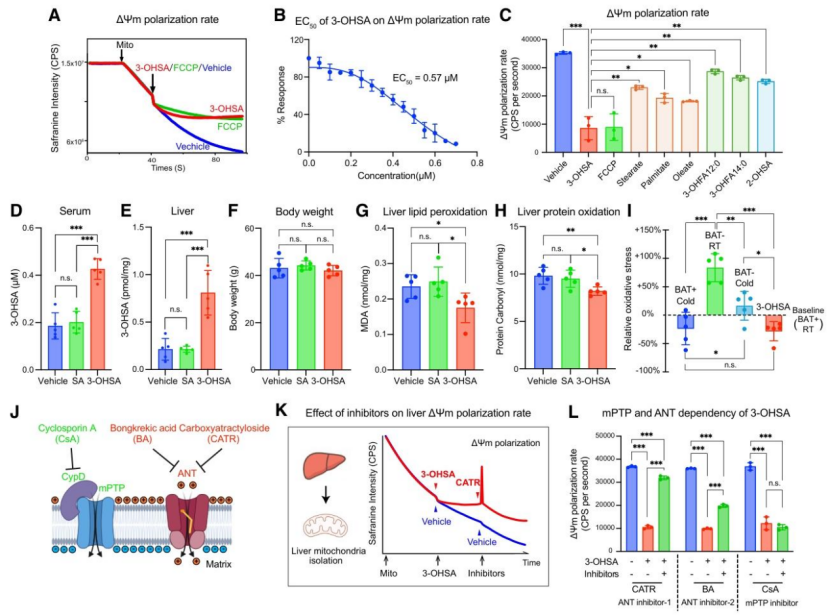
3-OHSA降低肝脏线粒体膜电位并减轻氧化应激
该研究采用循环代谢物优先的研究策略,探究活体状态下BAT对全身循环代谢组的整体调控作用,并筛选出与人BAT功能相关的分子3-OHSA。通过整合小鼠与人体两组数据,并结合组织、细胞外液、细胞条件培养基多层面分析,构建了BAT特异性循环分子特征谱,阐释了BAT不依赖产热、介导器官间信号交流的分子机制。