
Current Biology:季维克团队揭示BLTP2介导的脂质转运驱动外泌体生物发生与肿瘤进展新机制
BLTP2在SCAMP3依赖性内质网接触位点处桥接内质网与多泡体,促进外泌体生成
2026年8月24日,华中科技大学同济医学院基础医学院生物化学与分子生物学系季维克教授团队在《Current Biology》上发表了题为“BLTP2 bridges the ER and MVB for exosome biogenesis at SCAMP3-dependent ER contacts”的研究论文。该研究揭示了BLTP2通过外泌体发生,促进肿瘤生长与血管化,为靶向脂质转运和外泌体途径的肿瘤治疗提供了新思路。

亮点概述:
-
SCAMP3将内质网锚定的BLTP2招募至受Rab5调控的ER-MVB接触位点。
-
BLTP2维持内体中磷脂酰甘油及BMP/LBPA的水平。
-
BLTP2脂质转运促进腔内囊泡与外泌体的生物发生。
-
BLTP2依赖性外泌体的产生支持肿瘤生长和血管生成。
研究背景:
多泡体(MVBs)内含有腔内囊泡(ILVs),这些囊泡可被定向运送到溶酶体中进行降解,或作为外泌体释放介导细胞间通讯。MVB中ILVs的生物发生不仅依赖经典的内体分选转运必需复合物(ESCRT)途径,还涉及包含脂质在内的多种协同因子,其中双(单酰基甘油)磷酸,又称溶血双磷脂酸(BMP/LBPA)是一种富集于MVB/晚期内体的非常规磷脂,由线粒体心磷脂途径的中间产物磷脂酰甘油(PG)在晚期内体中转化而来,但具体机制仍不清楚。
在特定的细胞环境中,某些脂质分子的转运主要由膜接触位点(MCSs)处的脂质转运蛋白(LTPs)介导。桥接样LTPs(BLTPs)是一类具有贯穿疏水通道的杆状结构蛋白,可介导净脂质转运,从而为某些细胞器的快速生长奠定基础。BLTP2(又称KIAA0100)是一种新鉴定的BLTP,已知可抑制纤毛发生,并可调节质膜(PM)中磷脂酰乙醇胺(PE)的水平以维持其流动性和功能。然而,BLTP2的细胞功能,特别是其与细胞器生物发生之间的潜在联系仍不明确。
研究结果:
由于BLTP2是内质网(ER)上的潜在LTP,研究人员推测其功能需要通过伴侣细胞器上的衔接蛋白将其募集至ER相关的MCS。通过免疫共沉淀-质谱(coIP-MS)筛选发现,BLTP2与外泌体相关蛋白存在广泛互作,其中分泌载体膜蛋白SCAMP3显示出最强的相互作用。随后的共定位实验证实,SCAMP3能够有效将BLTP2招募至ER MCSs,因此,将研究重点聚焦于SCAMP3。免疫荧光(IF)和体外谷胱甘肽S-转移酶(GST)下拉实验表明BLTP2与SCAMP3存在直接且特异性的相互作用,且该结合具有区室特异性(主要在内体而非高尔基体)和动态调控性。在小鼠肾脏组织裂解液中,内源性SCAMP3可特异性共沉淀BLTP2与小GTP酶Rab5A,而不结合线粒体蛋白TOM20或高尔基体蛋白GM130,在生理条件下验证了该相互作用的特异性。超分辨结构照明显微镜(SIM)与原位邻近连接实验(PLA)进一步定位显示,约60%的内源性BLTP2点状结构分布于ER与SCAMP3标记的内体交界处,表明BLTP2在形成或维持ER-内体膜接触结构中发挥重要作用。
接下来,研究人员通过高分辨率活细胞成像技术检测了BLTP2-SCAMP3相互作用是否介导了ER-内体MCS的形成,发现共表达SCAMP3后BLTP2被高效募集至ER与SCAMP3阳性内体相邻的位点,且该招募具有特异性。此外,Split-GFP互补实验显示信号特异性出现在ER包裹的内体处,证实了SCAMP3是将BLTP2招募至ER-MVB MCSs的关键衔接蛋白。

 BLTP2与SCAMP3在ER-内体MCSs处发生相互作用
由于SCAMP3与Rab5A共沉淀,研究人员探究了Rab5A活性是否调控BLTP2的招募。发现内源性BLTP2和SCAMP3的点状结构与野生型GFP-Rab5A共定位,而显性负性突变体Rab5A-S34N则消除了这种关联,并导致Rab5A内体上的BLTP2点状结构消失。组成型活性突变体Rab5A-Q79L可增大内体体积,增强BLTP2与SCAMP3的共定位,表明SCAMP3介导的BLTP2募集受Rab5A的调控。同时,SCAMP3 siRNA敲低会显著削弱Rab5A驱动的BLTP2募集及两者间的相互作用。这充分证明,由Rab5A驱动的BLTP2募集严格依赖于SCAMP3。
随后,研究人员通过构建突变体等实验,鉴定了BLTP2蛋白C端区域中一个含带电残基簇的α螺旋-连接模块,该模块是BLTP2与SCAMP3结合的关键区域,其中带电残基对二者的相互作用至关重要。体外GST下拉实验显示,BLTP2的C端与SCAMP3的N端之间存在直接相互作用。AlphaFold预测了SCAMP3 N端80-120位残基形成的、面向胞质的α螺旋直接与BLTP2 C端(残基1703-2235)的α螺旋相互作用。此外,SCAMP1、SCAMP2和SCAMP4均可招募BLTP2,而神经元特异性的SCAMP5不能;coIP显示SCAMP1-4结合BLTP2、SCAMP5不结合,其中以SCAMP3最强。SCAMP1-3共有一段该相互作用所必需的保守N端片段,而SCAMP4缺少该片段,其纯化的N端(1-39位)不与GST-BLTP2-CT结合,提示SCAMP4为间接结合。因此SCAMP家族成员部分冗余,SCAMP3是主要的衔接蛋白。这一募集过程受到NEDD4介导的SCAMP3泛素化作用的抑制。

 SCAMP3对BLTP2的招募依赖于Rab5的活性
基于SCAMP3将BLTP2招募至ER-MVB的发现,研究人员系统探究了BLTP2在MVB/外泌体生物发生中的功能。通过蛋白质组学、透射电镜、纳米颗粒跟踪分析(NTA)和活细胞成像等多种实验手段证明,BLTP2敲除(KO)显著减少外泌体数量及外泌体标志蛋白(如TSG101、CD81、CD9、CD63、SCAMP3及EGFR)含量,表明BLTP2是高效形成ILV/外泌体所必需的。虽然BLTP2缺失也轻度影响溶酶体降解通路,但整体数据表明BLTP2优先参与外泌体货物分选,而BLTP2-SCAMP3相互作用标志着一种专司外泌体分泌的独特MVB亚群。通过构建脂质转运缺陷型突变体和SCAMP3结合缺陷型突变体,发现两者均无法挽救BLTP2-KO细胞的外泌体分泌缺陷,说明BLTP2通过其脂质转移活性以及在ER-MVB接触点处与SCAMP3的相互作用共同支持ILV/外泌体的生物发生。
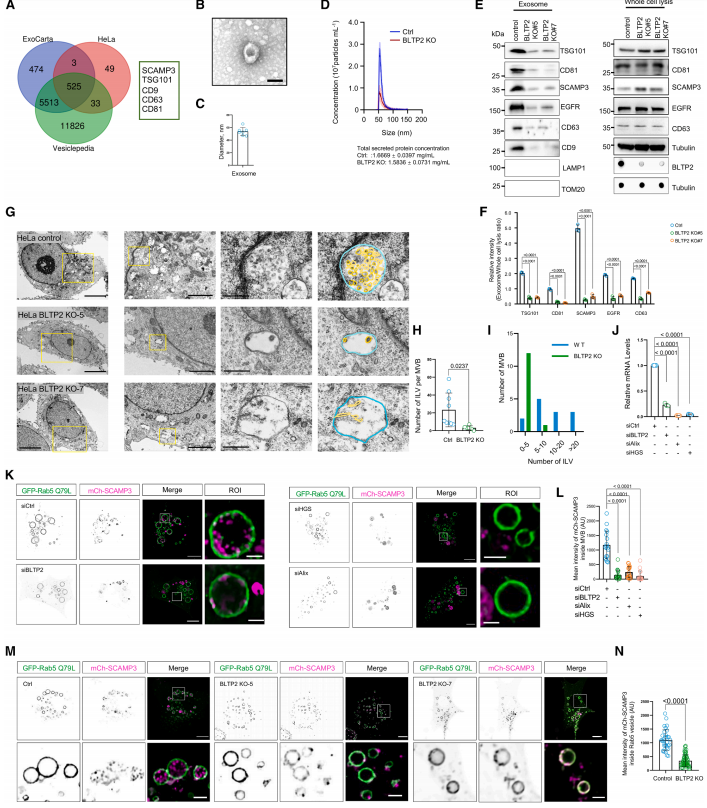
 BLTP2的缺失损害外泌体/ILVs的形成
为鉴定被转运的脂质种类,研究人员在HEK293细胞中对BLTP2-GFP进行了coIP,并结合非靶向脂质组学进行分析,发现BLTP2偏好结合PG,它是MVB富集脂质BMP/LBPA的前体。锥形脂质,如PE、甘油二酯(DAG)、神经酰胺、胆固醇和BMP/LBPA,能够在ILV形成过程中促进膜的负曲率,因此BLTP2可能通过转运这些脂质来促进膜内陷。研究人员从对照组和BLTP2-KO细胞中分离了内体和ER膜并进行靶向脂质组学分析。在内体中,KO细胞的PG、BMP/LBPA和PE含量显著降低,其中PG和BMP/LBPA的降幅大于PE,而磷脂酰胆碱(PC)、磷脂酸(PA)、磷脂酰丝氨酸(PS)和磷脂酰肌醇(PI)基本未发生变化;而ER中多种脂质也受不同程度影响,提示BLTP2的缺失广泛影响了ER的脂质稳态。由于PG也是线粒体主要磷脂和心磷脂的必需前体,研究人员探究了BLTP2缺失是否会扰乱线粒体脂质组。结果显示,KO细胞中线粒体PG减少约44%(PE轻度升高),但心磷脂基本保留。这被认为是细胞对BLTP2依赖性PG流量受损的系统性代偿——细胞下调PG合成而非任其累积——而非线粒体本身受损,因此ILV/外泌体缺陷非继发于线粒体损伤。IF进一步证实BLTP2-KO细胞中,BMP/LBPA形成内体腔内的点状信号几乎消失。综上,BLTP2特异性调控内体中的PG、BMP/LBPA和PE,以支持ILV的形成。
最后,研究人员揭示了BLTP2依赖性外泌体生物发生与细胞增殖、肿瘤生长及肿瘤血管化之间的关联。BLTP2-KO导致HeLa细胞增殖下降,且可被纯化的野生型外泌体剂量依赖性地部分挽救;在4T1同基因移植小鼠模型中,接种BLTP2敲低细胞的小鼠有70%完全不成瘤,其余成瘤者瘤体也明显小于对照;CD31免疫组化显示敲低组瘤内毛细血管显著减少,且可被外泌体回补部分恢复。
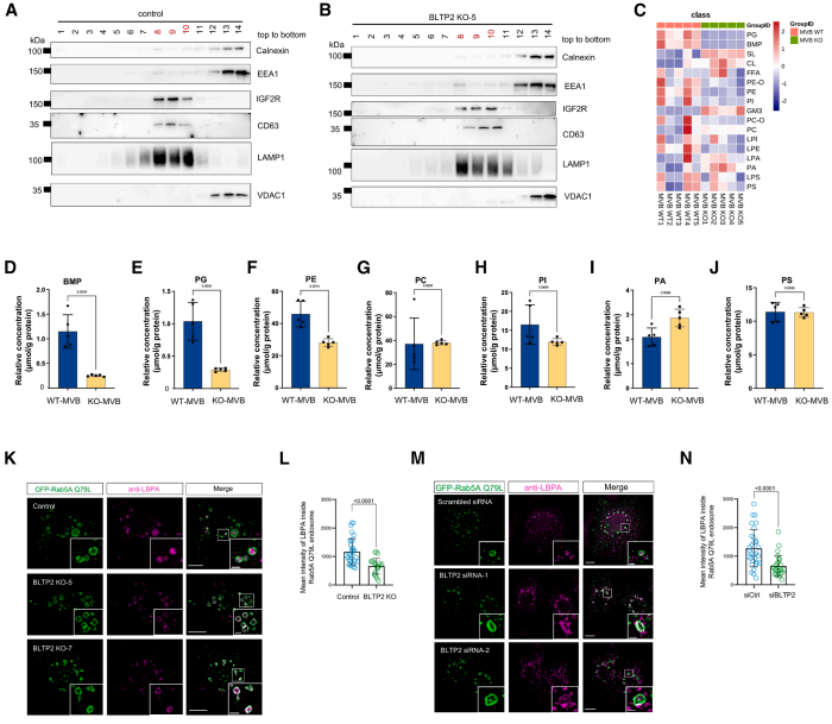
 BLTP2的缺失降低了内体中PE、PG和BMP/LBPA的水平
总之,该研究表明,SCAMP3将ER锚定的脂质转运蛋白BLTP2招募至受Rab5调控的ER-MVB接触位点;在这些位点上,BLTP2参与维持PG/BMP的稳态、调控ILVs与外泌体的生物发生,以及促进肿瘤生长与肿瘤血管化。