Cell:生命早期的脂质密码:细菌糖鞘脂如何同时塑造共生菌适应与新生儿免疫
氧响应性细菌糖鞘脂连接共生菌适应度与新生儿宿主免疫发育
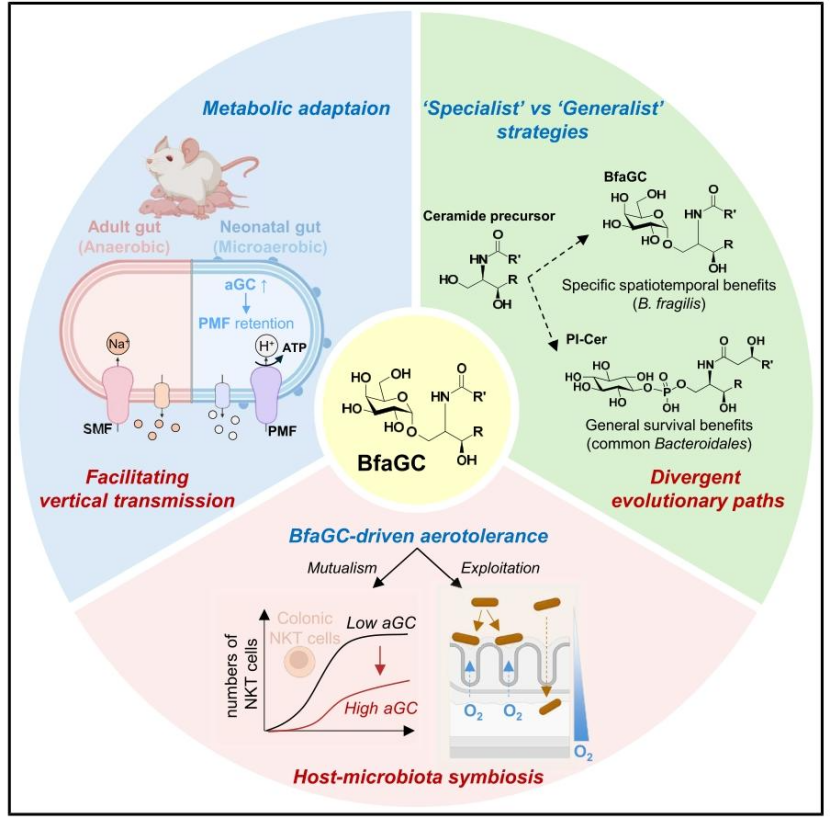
2026年9月,美国布莱根妇女医院等单位的研究人员在《Cell》(IF:45.1)上发表了题为“Oxygen-responsive bacterial glycosphingolipid links symbiont fitness and immune development in neonatal host”的研究论文,揭示脆弱拟杆菌通过膜糖鞘脂α-半乳糖神经酰胺(BfaGC)响应新生儿肠道瞬时富氧微环境,实现促进自身定植与调控宿主免疫发育的双重功能。
亮点概述:
-
BfaGC促进脆弱拟杆菌在暴露于氧气的新生儿肠道中定植。
-
脆弱拟杆菌利用BfaGC控制质子泄漏,以维持呼吸生物能量代谢。
-
BfaGC可能有助于扩大细菌生态位并塑造宿主免疫发育。
-
两类鞘脂分别赋予细菌在宿主中的专一型适应度与广谱型适应度。
研究背景:
共生微生物与哺乳动物协同进化,参与调控宿主代谢、免疫发育及生理稳态,但共生关系需要在宿主每一代个体体内重新构建:母体微生物定植胎儿原本无菌的肠道,组建新生微生物群落并随宿主同步发育成熟。目前学界尚不明确维系这种微生物代际传递连续性的底层分子机制。
分娩及出生早期是微生物代际传递中最严苛的生态瓶颈之一。新生儿胃肠道的氧气浓度、营养组成、免疫状态会发生剧烈波动,唯有可感知、适应这类动态变化的共生菌,才能完成稳定定植。该窗口期也奠定宿主终生代谢与免疫格局。人类出生后100周内,婴儿肠道菌群经历剧烈重塑,双歧杆菌、拟杆菌等类群丰度动态更迭。婴儿初始菌群虽受分娩方式影响,出生后个体间微生物传播、宿主自身生理状态与饮食转换同样驱动菌群成熟,可介导该发育过程的效应分子和作用机制仍有待解析。在该关键发育阶段,人体重要共生菌脆弱拟杆菌,表现出区别于其他拟杆菌物种的独特早期定植特征,成为解析早期菌群建立机制的重要研究对象。
研究结果:
人群队列数据显示,脆弱拟杆菌在婴儿拟杆菌群落中早期短暂显著富集。研究人员利用定植10种拟杆菌的悉生小鼠模型重现该现象,提示只有脆弱拟杆菌拥有新生宿主专属生存性状。研究构建超16万株的转座子突变文库开展转座子测序实验,发现新生宿主定植存在严苛遗传瓶颈。成年宿主中富集碳水化合物、氨基酸代谢通路,说明营养自主是成年肠道细菌核心适应性状;O-抗原生物合成(尤其是多糖A合成)提示胞外多糖同时参与细菌存活与宿主互作。新生宿主富集通路中,氧化磷酸化通路十分突出,其中包含编码细胞色素bd氧化酶的cydAB基因,该蛋白是有氧呼吸末端氧化酶,对新生宿主定植不可或缺。脆弱拟杆菌作为严格厌氧菌,早期定植会短暂启用氧依赖代谢,同时调动氧化应激防御、丙酸代谢等辅助通路,协同应对新生肠道瞬时富氧环境,保障早期定植。
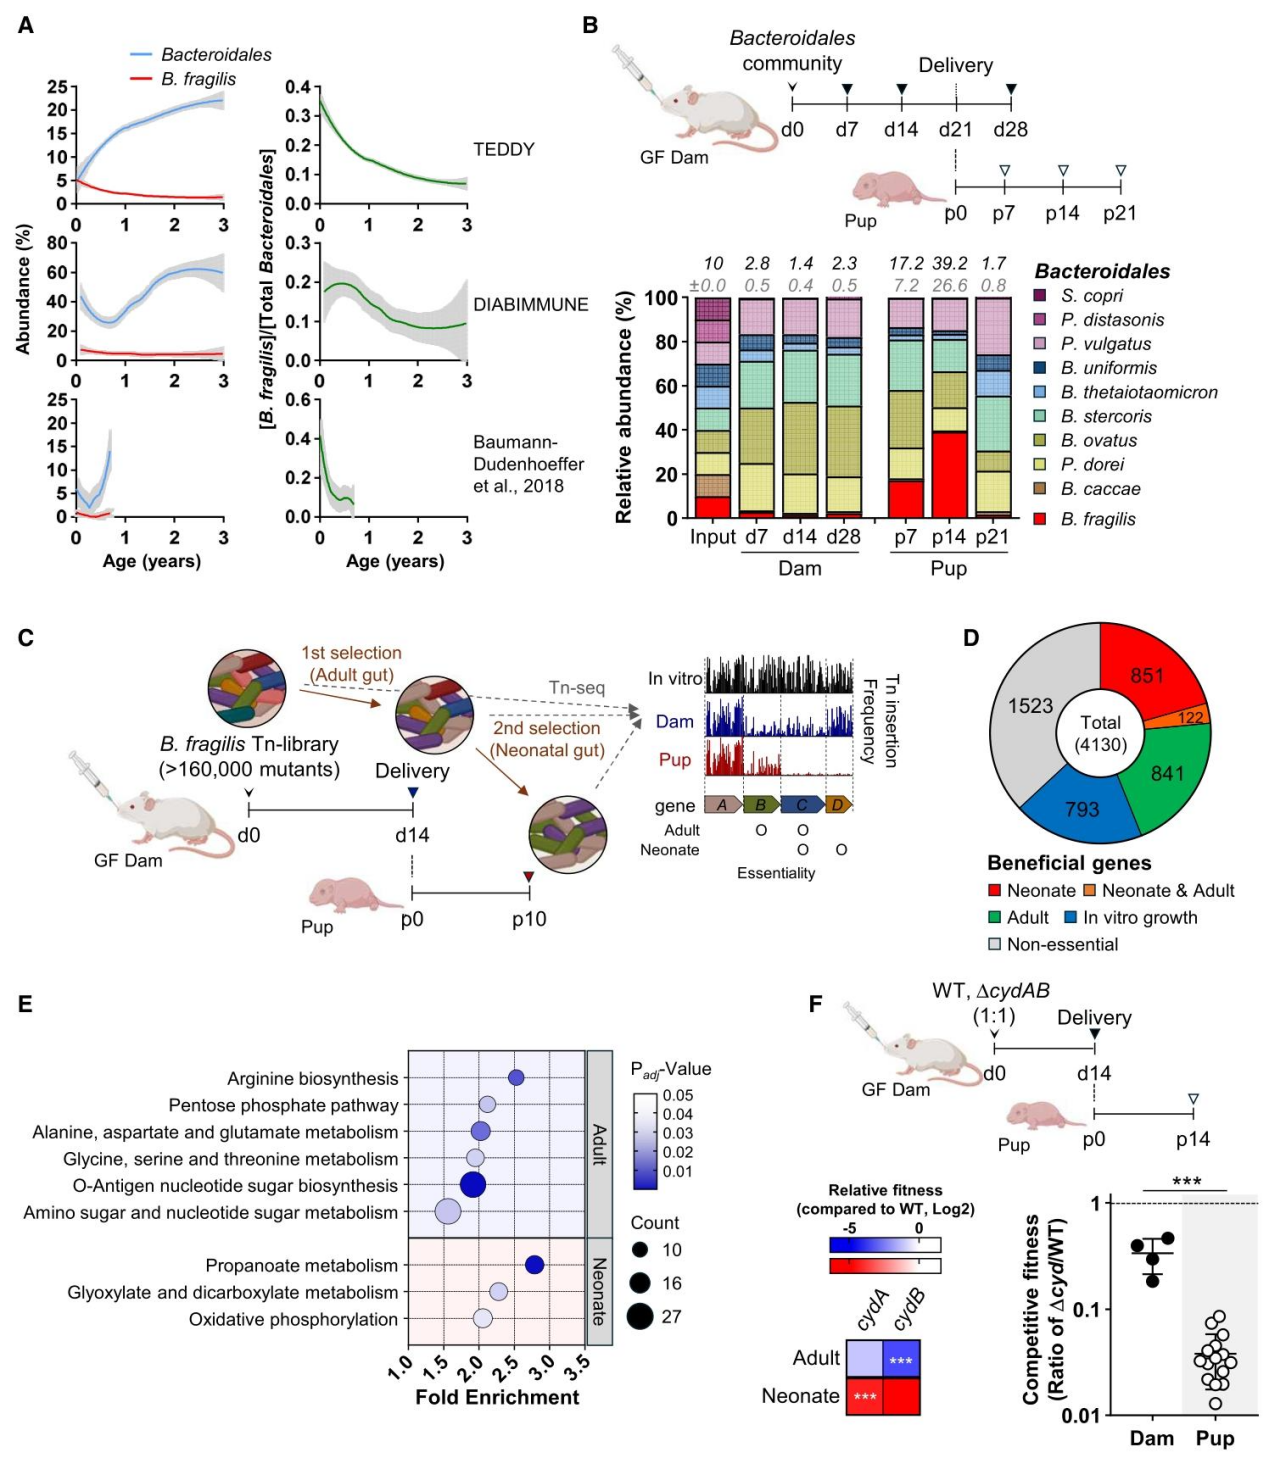
新生儿肠道中脆弱拟杆菌定植的遗传决定因素
通过比对10株拟杆菌基因组,研究人员从98个脆弱拟杆菌新生定植有益基因中筛选得到氧气响应基因agcT,其编码的酶负责合成特有鞘脂BfaGC。核心神经酰胺合成基因对成年定植至关重要,而agcT仅在新生宿主发挥功能。体内竞争定植实验表明,敲除agcT的突变株成年宿主存活不受影响,但新生幼崽中定植量下降7倍,效应集中于出生最早期;在不合成aGC的多形拟杆菌异源表达agcT,即可增强其新生宿主定植能力,证实BfaGC是早期定植必需且充分的因子。体外实验证实氧气可诱导agcT及BfaGC表达,BfaGC特异性提升细菌耐氧能力,对饥饿、低pH等其他胁迫无保护作用。共定植实验进一步证明,BfaGC带来的定植优势依赖环境氧气水平,通过耐受瞬时氧气暴露助力脆弱拟杆菌在新生肠道存活。
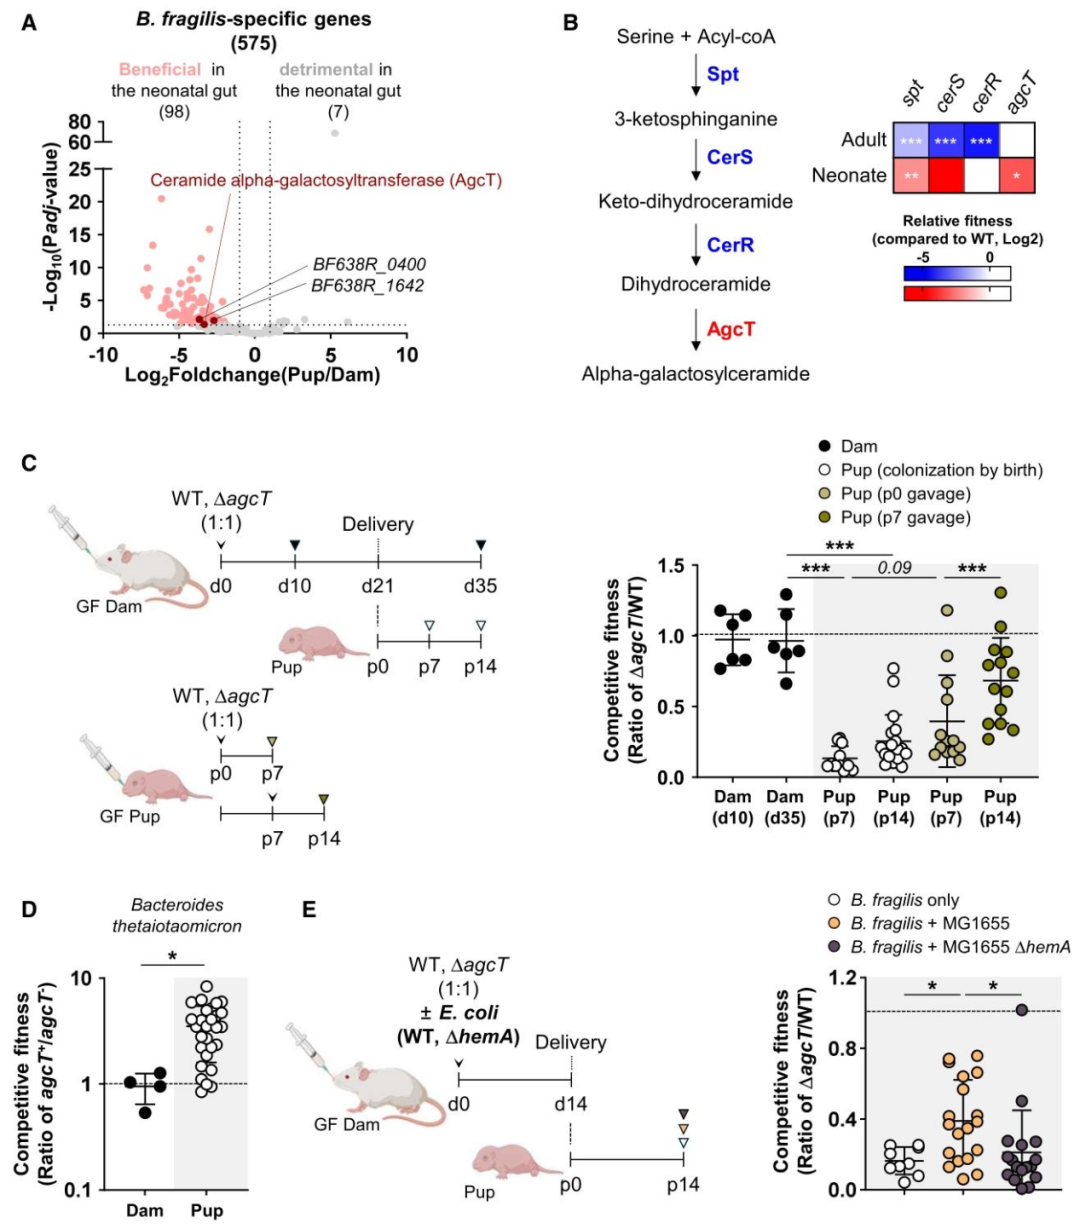
BfaGC通过增强对氧耐受性,促进脆弱拟杆菌在新生儿肠道内定植
新生肠道存在瞬时氧暴露,研究推测BfaGC通过重塑细胞膜特性帮助细菌适配富氧微环境。耗氧实验显示,ΔagcT突变株有氧呼吸减弱,氧暴露后仍依靠低产能发酵代谢,代谢通量无法有效耦合进入电子传递链。成年宿主体内脆弱拟杆菌更多利用钠偶联复合物,新生宿主转向质子依赖系统;BfaGC可减少质子渗漏,维持质子动力势。脂质囊泡实验直接证实,BfaGC能够降低细胞膜质子通透性,该作用并非改变电子传递链复合体活性。功能验证表明,BfaGC发挥耐氧、定植增益效应,必须依赖完整有氧呼吸链。其作用机制推测是糖基化修饰优化神经酰胺头部基团排布,降低膜界面质子泄漏概率,把细胞膜物理特性、能量代谢和氧气适应性关联起来。
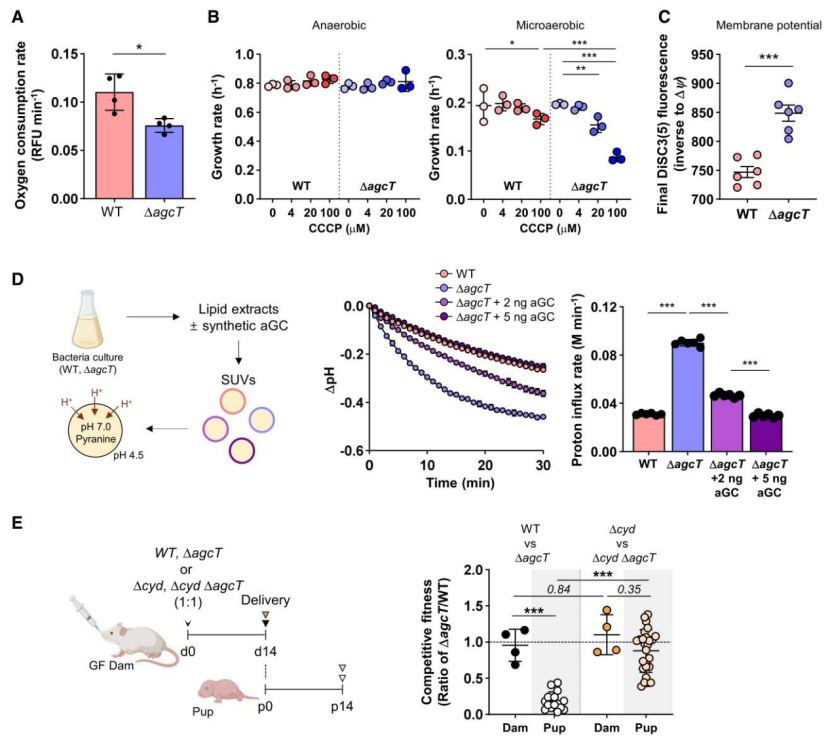
BfaGC通过稳定膜电位与质子滞留能力来增强脆弱拟杆菌的需氧呼吸过程
BfaGC是非多态性抗原呈递蛋白CD1d配体,可调控结肠NKT细胞稳态,该免疫效应局限于新生阶段,与肠道氧波动、细菌定植高峰时间重合。利用无法诱导BfaGC合成的ppGpp⁰突变菌株证实:并非单纯细菌定植量,而是新生阶段BfaGC的生成,通过调控NKT细胞增殖,校准结肠NKT细胞数量,塑造宿主早期免疫成熟。BfaGC赋予的耐氧能力同样作用于成年宿主。小肠回肠等局部富氧位点BfaGC合成上调,帮助脆弱拟杆菌适应局部富氧生态位。产肠毒素脆弱拟杆菌大多保留BfaGC合成能力。动物实验证明,缺失BfaGC或细胞色素bd氧化酶后,产肠毒素脆弱拟杆菌即便正常表达毒素,也丧失定植优势、诱发肠道损伤。综上,BfaGC依赖的有氧呼吸,既是生命早期定植基础,同样支撑成年宿主条件下细菌生态位扩张。该性状兼具共生互利和致病潜力,后果取决于具体环境。
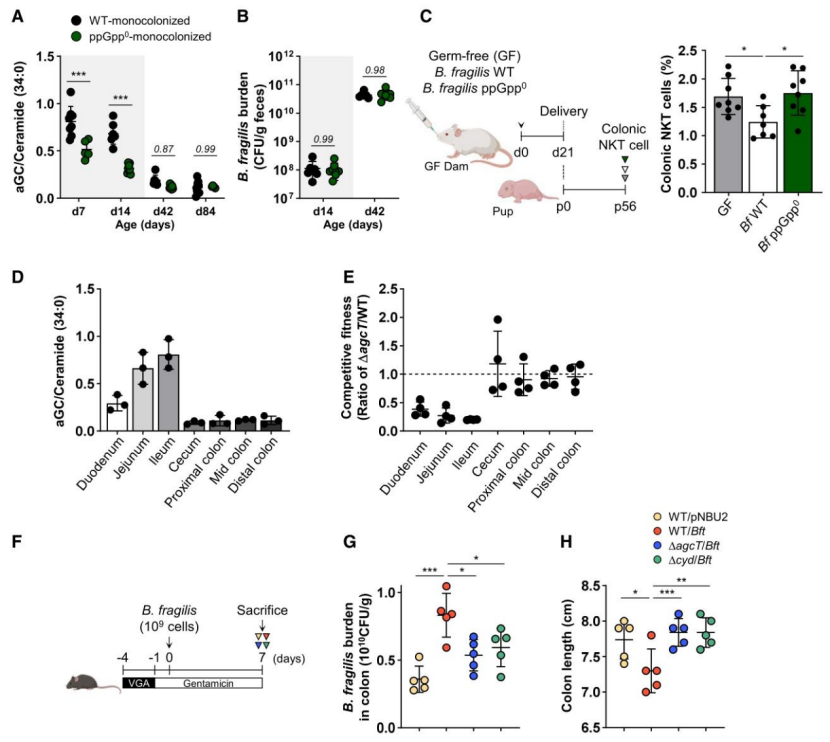
氧诱导的BfaGC协调新生儿免疫印迹,并促进产肠毒素菌的生态位扩张
拟杆菌目鞘脂合成存在进化分化。少数物种如脆弱拟杆菌合成aGC,绝大多数合成另一类糖鞘脂肌醇磷酸二氢神经酰胺(PI-Cer)。研究人员在不同肠道环境对比两类鞘脂的适应度贡献,发现PI-Cer是 “广谱型” 脂质,保障细菌在成年稳定厌氧肠道中长期存活;aGC为 “专一型” 脂质,专门适配新生宿主环境,助力早期生态位抢占。两套实验体系证实二者存在功能权衡、相互干扰:aGC削弱PI-Cer介导成年宿主存续能力,PI-Cer部分限制aGC在生命早期的适应优势。二者膜功能并不相同,PI-Cer主要参与抗菌肽抗性,不调控质子通透性。动物及人类婴儿宏基因组数据印证该模式为aGC相关物种在生命早期富集,PI-Cer相关类群随年龄增长占比提升。这种分化揭示宿主相关微生物进化出分子特化性状,匹配肠道环境时间、空间结构的普遍规律。
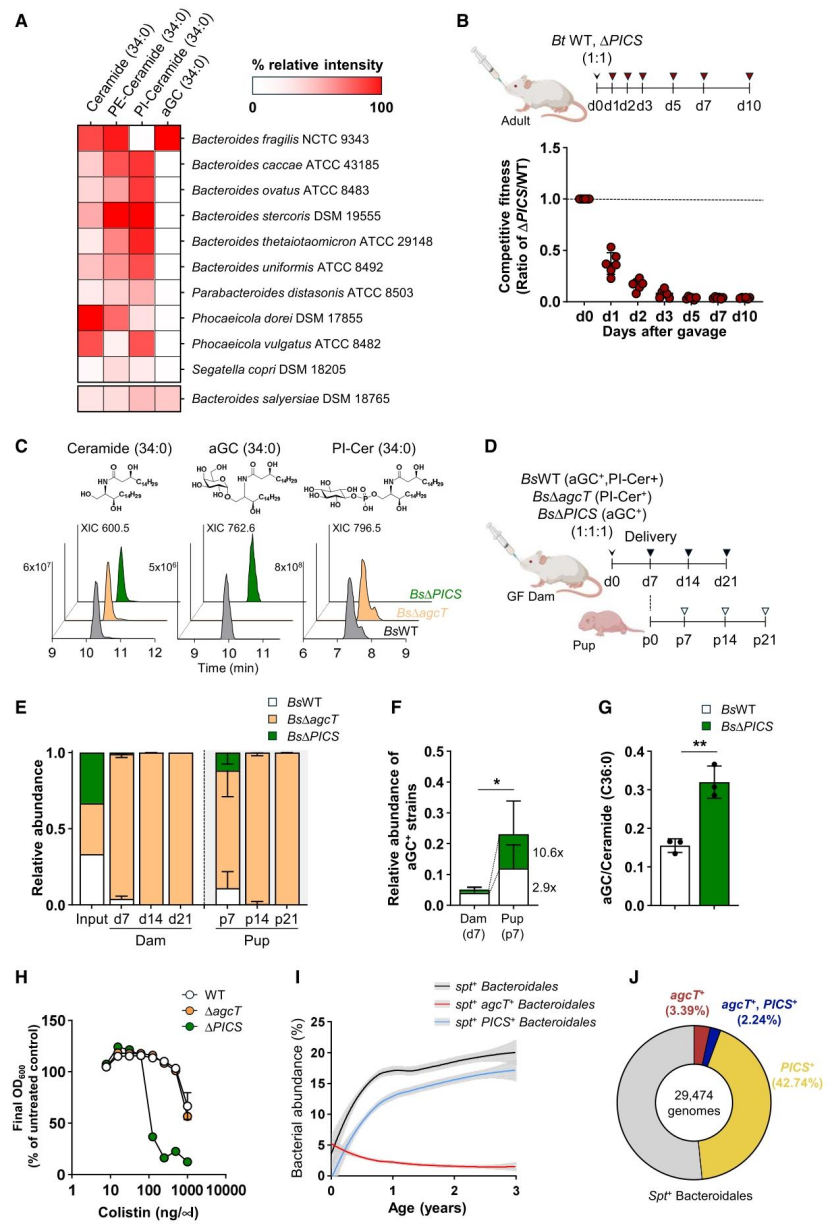
BfaGC介导拟杆菌目在新生儿肠道中的时序性生态位获取过程
综上,该研究在新生宿主定植条件下开展全基因组适应度图谱分析,筛选出氧响应性糖脂BfaGC。该分子将细菌细胞膜的生物物理特性与微需氧新生肠道环境的适应性相关联。BfaGC的生物合成在生命早期达到峰值,与宿主黏膜免疫发育的关键时间窗口相重合。研究进一步揭示了一种物种特异性策略:微生物代谢物可协同调控细菌的生存适应度与宿主的发育生理,为理解共生关系如何实现代际延续提供了分子框架。