
Nature Aging:破译衰老脂质规律:跨物种研究发现脂质酰基链延长是衰老保守特征
更长的脂质标志着衰老并限制寿命
2026年10月,荷兰阿姆斯特丹大学医学中心等单位的相关研究人员在《Nature Aging》(IF:25.0)上发表了题为“Longer lipids mark aging and constrain lifespan”的研究论文,揭示了脂质链长度重塑是衰老的一种保守且可干预的标志,并提示靶向脂质重塑可能对改善人类衰老健康具有巨大治疗潜力。

亮点概述:
-
通过跨物种和多组织脂质组学研究,发现脂质酰基链延长是小鼠、秀丽隐杆线虫、果蝇和人类中衰老的一个保守标志。
-
衰老以向长链脂质转变并伴随短链脂质减少为特征,表明存在比例性重塑,该现象也见于人类心脏病进展,并可被饮食限制逆转。
-
脂质重塑因子Plb1是该过程的调节因子,其表达与小鼠寿命相关,且遗传分析支持其在人类衰弱中起因果作用。
-
在秀丽隐杆线虫中,敲低Plb1可逆转脂质链延长并以脂质链长度依赖性方式延长寿命。
研究背景:
衰老给社会带来重大挑战,会增加慢性病易感性和功能衰退。脂质作为膜完整性、细胞能量和信号传导的关键调节因子,正逐渐被认为是衰老过程中的关键参与者。极长链脂肪酸延长(ELOVL)家族的酶催化脂质链延长,而β-氧化循环在哺乳动物的过氧化物酶体和线粒体中发生,通过循环实现脂肪酸的完全分解,可以减少用于复合脂质合成的长链脂肪酸的可利用性,从而间接改变脂质链长度组成。ELOVL 表达降低与秀丽隐杆线虫寿命延长以及同基因群体中线虫寿命差异相关,而人类 ELOVL2 的甲基化状态是可靠的衰老标志物,这都指向脂质延长在衰老过程中的作用。相反,β-氧化活性随年龄增长而下降,这可能促进具有潜在致病效应的较长链脂质的积累。这些数据提示,脂质尾部长度可能在衰老中具有重要的因果作用。然而,目前尚未对复杂脂质长度随年龄如何变化进行系统性评估。
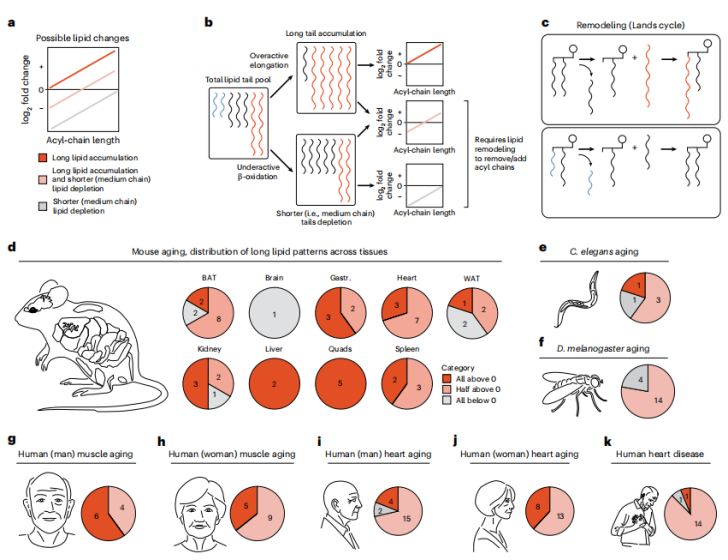
研究人员此前使用自建的超高效液相色谱-高分辨率质谱(UPLC-HRMS)平台对年轻和老年小鼠的10种组织进行脂质组学分析,发现双(单酰基甘油)磷酸酯(BMP)会随衰老广泛积累。后续重新观察这批数据集后,发现一种此前未被注意的规律:在心脏等组织中,长链BMP(如总碳数44)比短链BMP(如总碳数34或36)随年龄增长积累得更明显。这种差异具有统计学显著性,而且BMP酰基链长度与年龄相关的倍数变化呈强正相关。基于此,研究人员随后分析了10种小鼠组织中所有脂质类别的酰基链长度与年龄相关倍数变化,发现多数组织中的大多数脂质类别呈正相关,提示长链脂质倾向于随年龄积累。受影响最为显著的脂类类别包括BMP和溶血磷脂酰甘油(LPG),二者均在10种组织中的7种中表现出显著的链长依赖性积累。磷脂酰胆碱(PC)和磷脂酰甘油(PG)在5种组织中也受到显著影响。为了确定在小鼠中观察到的脂质酰基链延长现象是否在不同物种中具有保守性,研究人员先后分析了秀丽隐杆线虫、果蝇、人类骨骼肌和心脏的脂质组数据,发现随年龄增长,长链脂质和双键数量在多个物种和组织中均普遍积累增加,且无显著性别差异。

多种小鼠组织中,脂质链长度随年龄增加
鉴于ELOVL酶会选择性地延长特定链长范围内的脂肪酸,研究人员探究是否是特定脂质链长而非脂质类别受到不成比例的影响。因此将目标聚焦于溶血磷脂,它们仅含一条酰基链(通常长度为10至26个碳)。对溶血磷脂的分析结果表明,随着年龄增长观察到的脂质延长并不仅仅是由于延长酶作用于已有脂肪酸的结果,相反这种变化似乎是由长链脂质的积累和短链脂质的减少共同导致的。研究人员提出三种可能的模型来解释观察到的延长表型:(i) 仅长链脂质的积累,(ii) 长链脂质积累与短链(即中链)脂质减少的组合,(iii) 主要是短链脂质的减少。这些情况可能反映了延长酶活性增加和β-氧化受损的共同作用。延长酶直接促进长链脂质的合成,而β-氧化减弱则限制长链脂质的完全分解。这些过程共同作用可能驱动长链脂质的积累和较短链种类的减少,导致脂质链长的整体偏移,以及脂质重塑的改变,从而将较短链替换为较长链。
较短的(也就是中链)脂质损失是与衰老相关的脂质延长的主要原因
鉴于观察到短链脂肪酸会随着年龄增长而显著减少,研究人员假设脂质重塑因子可能参与这一过程,在主要候选因子中鉴定出 Plb1(一种磷脂酶 B),其在肌肉中的表达与寿命呈负相关。接着利用秀丽隐杆线虫(C. elegans)对Plb1功能进行验证,秀丽隐杆线虫携带9个Plb1同源基因,其中7个已有可用于敲低表达的RNAi构建体。与在小鼠中的观察结果一致,发现RNAi敲低的线虫均显著延长寿命。接下来,研究人员通过 RNAi 特异性敲低秀丽隐杆线虫的 Plb1 同源基因 F36A2.9,将其效应与敲低“长链脂肪酸延长酶”1基因elo-1(一种已知的脂质延长酶)的效应进行比较,脂质组学分析显示,F36A2.9和elo-1的RNAi处理均显著缩短整体脂质链长度。为了从功能上确定所观察到的寿命延长是归因于脂质酰基链长度的缩短,还是归因于elo-1或F36A2.9活性降低所导致的,通过联合处理实验,在经elo-1或F36A2.9 RNAi处理的线虫中补充长链脂肪酸(C18:1、C20:1或C22:1)。与对照组相比,补充这些长度的脂肪酸足以阻止由elo-1或F36A2.9 RNAi诱导的寿命延长。

脂质长度和寿命中的Plb1/F36A2.9轴
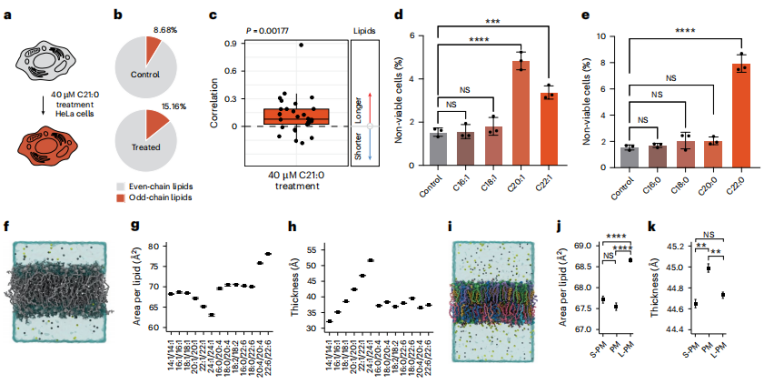
接着,研究人员评估脂质链长对细胞存活率的影响。通过使用奇数链脂肪酸C21:0(其在细胞中天然丰度较低)处理细胞并追踪其掺入情况,评估了外源施加的脂肪酸是否被整合进细胞脂质组(而非仅被消耗供能),观察到总脂质组中奇数碳链脂质的含量明显增加,从 8.68% 上升至 15.16%,这表明经外源性脂肪酸处理后的物质已被整合到细胞脂质组中。这种富集现象在所分析的大多数脂质类别中都很明显。
随后研究人员接着测试不同脂肪酸处理对细胞存活率的影响,发现碳链长度为16或18的脂肪酸对存活率无影响,长度为20的脂肪酸会以饱和度依赖的方式降低存活率,而长度为22的脂肪酸则显著降低存活率,且与饱和度无关。这表明,随衰老而富集的长链脂质会损害细胞存活率。在此基础上,研究人员通过分子动力学模拟,探究了脂质酰基链组成变化对膜生物物理性质的影响。结果发现,当脂质尾部长度增加(同时保持双键数量不变)时,双层膜变厚。在尾部长度固定的情况下,双键数量的增加会导致每单位脂质的面积增大,而膜厚度减小。
脂质链长度会降低细胞活力并改变细胞膜的生物物理特性
综合来看,该研究提出脂质链长度是衰老机体功能失调的一个主要驱动因素,其表现既包括较短尾部脂质的减少,也包括较长尾部脂质的积累。这一发现提示,靶向脂质重塑可能对改善人类衰老健康具有巨大治疗潜力。